

压力如何摧毁大脑突触?这篇 Cell Stem Cell 找到人类专属调控密码
边缘系统回路(包含杏仁核、海马、前额叶皮层和下丘脑)在整合情境、情绪和内感受信号以调节情感和压力反应中至关重要。杏仁核作为该网络的核心枢纽,通过投射至下丘脑和脑干区域驱动自主神经和神经内分泌效应。尽管焦虑、重度抑郁症等压力相关疾病高发,但其背后的神经生物学机制仍不清楚。
近日, 耶鲁大学研究团队 在“ Cell Stem Cell ”上发表了最新研究“ Human amygdala-like telencephalic organoids model stress circuitry in assembloid systems ”。该研究成功构建了人类杏仁核脑类器官,该类器官高度还原了人类杏仁核的细胞组成、区域特异性发育特征。进一步将hATOs与具有室旁核特征的下丘脑类器官融合,构建了杏仁核-下丘脑组装体,实现了对压力响应回路的体外建模。更为重要的是,揭示了皮质醇暴露会显著上调灵长类特异性逆转录转座子来源的非编码RNABCYRN1,从而阐明了压力激素信号转导至逆转录转座子生物学及人类特异性突触调控的全新分子机制。
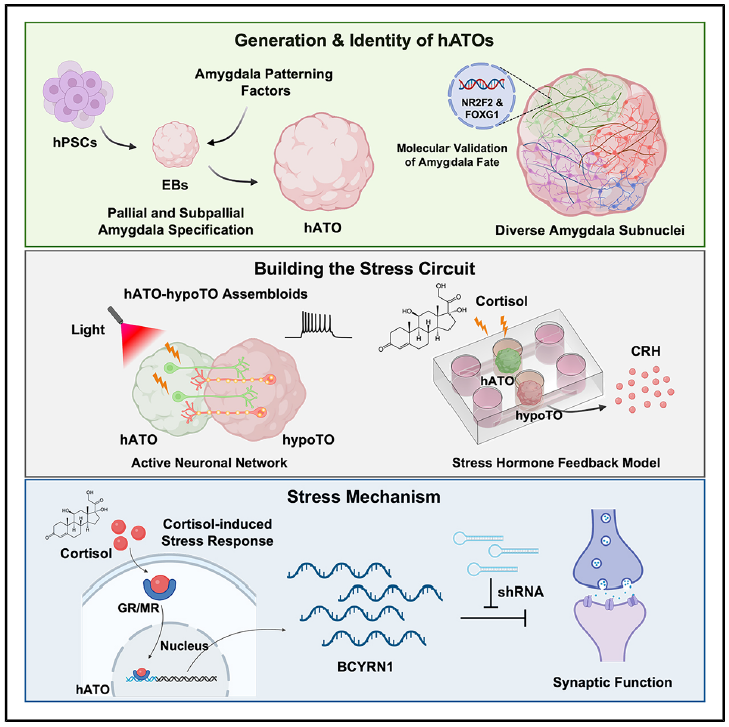
·研究亮点 ·
分步诱导策略构建 hATO 杏仁核类器官
依据杏仁核不同核团的胚胎起源,组合腹侧端脑信号(SFRP2/FGF7/TGFα)、外侧端脑 RXR 信号(SR11237)、SHH 亚皮层信号,成功生成包含基底外侧核 BLA、中央核 CeA 等多类谱系细胞的人杏仁核脑类器官 hATO。
构建杏仁核下丘脑边缘系统组装体(hATOhypoTO)
将 hATO 与经改造、具备室旁核 PVN 特征的下丘脑类器官 hypoTO 融合;体外复现杏仁核下丘脑之间双向轴突投射与功能性突触环路。
皮质醇应激模型与多组学挖掘全新分子机制
在类器官中引入皮质醇刺激,结合单细胞转录组测序和电生理记录,锁定灵长类特异性逆转座子来源非编码 RNA(BCYRN1),阐明压力激素损伤突触的全新通路。
·研究结果 ·
1、hATOs的生成与区域分子特征解析
杏仁核坐落于内侧颞叶、海马前方,拥有十余个功能亚核,不同核团分别起源于胚胎尾腹侧端脑的皮层与皮层下两大区域,基底外侧核 BLA 来自腹 / 外侧皮层,中央核 CeA、内侧核 MeA、插入核 IA 主要来自皮层下,这种复杂的多起源特点,给体外模型构建带来巨大挑战(图1A)。研究团队结合杏仁核真实胚胎发育规律建立分步诱导方案,先诱导得到端脑命运的细胞,再通过 SFRP2/FGF7/TGFα 组合实现腹侧端脑早期区域特化,继续加入 RXR 激动剂 SR11237 激活维甲酸通路诱导外侧皮层命运,同时搭配 SHH + 嘌呤莫胺诱导皮层下命运;研究特别注意 SHH 信号不可过早激活,避免抑制杏仁核发育关键基因EMX1/EMX2,经过时间与剂量的反复筛选,确定在第 1624 天延迟激活 SHH 并搭配高浓度 SR11237的最优条件。该方案可以有效激活 MEIS1、DLX2、FOXP2、LHX9 等杏仁核特征转录因子,诱导 CRH、SST、TAC1、PDYN 等神经肽的表达,同时保留EMX1/EMX2的表达,最终得到人杏仁核脑类器官 hATO(图1B)。
为系统评估 hATO 模型,选取发育第 40 天早期神经发生、第 80 天分化成熟两个关键时间点开展 单细胞 RNA 测序 ,聚类分析得到 31 个细胞簇,完整覆盖神经祖细胞、谷氨酸能兴奋性神经元、GABA 能抑制性神经元、星形胶质细胞、少突胶质前体细胞 OPC 等杏仁核主要细胞类型(图1C)。轨迹分析还原出从祖细胞向成熟神经元、胶质细胞逐步分化的发育路径,GABA 能中间神经元也观测到中间祖细胞的过渡状态,和人类胎儿大脑体内发育轨迹高度契合,且 40 天与 80 天两个时间点的细胞整体组成保持稳定(图1D-E)。将 hATO 转录组数据和人类胎儿脑图谱做比对,结果显示 hATO 转录特征与孕后 8-24 周的胎儿杏仁核高度匹配,端脑标记FOXG1和杏仁核特异性标记NR2F2共表达是 hATO 的分子特征,普通皮层类器官几乎不表达 NR2F2,杏仁核发育关键基因FEZF1同样在 hATO 中高表达;和皮层、丘脑、纹状体等其他脑区类器官横向对比,也只有 hATO 能够同时高表达 FOXG1 与 NR2F2。同时 hATO 高表达皮质醇受体编码基因NR3C1、NR3C2,说明这套模型天然具备响应压力激素的分子基础(图1F-M)。研究还设置两组完全独立的分化批次验证重复性,不同批次细胞聚类高度重合,基因表达相关性良好,杏仁核亚核标记、SST、CRH 等关键神经肽的表达模式也保持稳定,证明 hATO 可以稳定、可重复重现发育阶段人类杏仁核的细胞与分子特征。
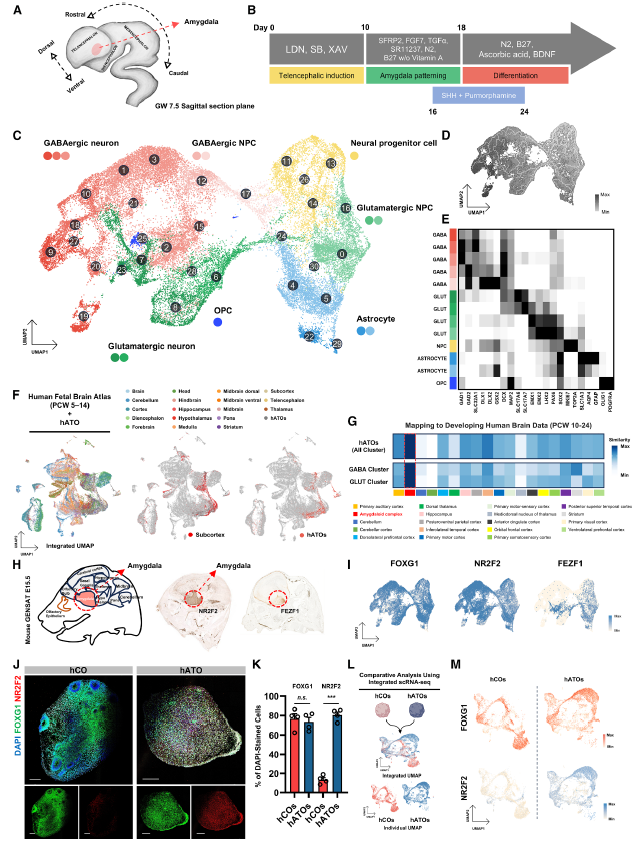
图1 hATOs的生成与区域分子特征解析
2、hATOs重现人类发育中杏仁核的发育和分子特征
人类杏仁核拥有约 13 个功能亚核,各个亚核起源于皮层皮层下边界不同的胚胎区域,hATO 能够重现这一复杂的区域分子多样性。在 hATO 中可以检测到腹侧、外侧皮层标记,以及 LGE(ZNF503和TLE4)、CGE(PROX1和SP8)、MGE(NKX2-1和LHX6)等各类皮层下祖细胞的特征基因,同时表达皮层皮层下边界标记 GSX2(图2A)。通过 UMAP 分析与免疫染色观察,hATO 内部形成了对应 BLA、MeA、CeA、IA 的亚核样区域,BLA 样区域可以看到RORB与谷氨酸能标记 VGLUT2 共富集,CeA、IA、MeA 也分别对应 ISL1、FOXP2、FIGN 的特征表达(图2B-C)。杏仁核内部大量功能由不同亚型抑制性神经元实现,hATO 的 GABA 能神经元簇表达 CRH、VIP、SST、PVALB、NPY、CCK、PDYN 等杏仁核特征神经肽,其中 CRH 阳性细胞属于 GABA 能抑制性神经元(图2D-L)。研究进一步将 hATO 单细胞数据与成人杏仁核参考数据集整合比对,二者的细胞类型、亚核转录特征具备较高可比性,hATO 中同样存在 CRH 阳性神经元,以上结果共同证实 hATO 能够复现杏仁核多亚核架构,同时保留兴奋性、抑制性神经元完整的分子特征。
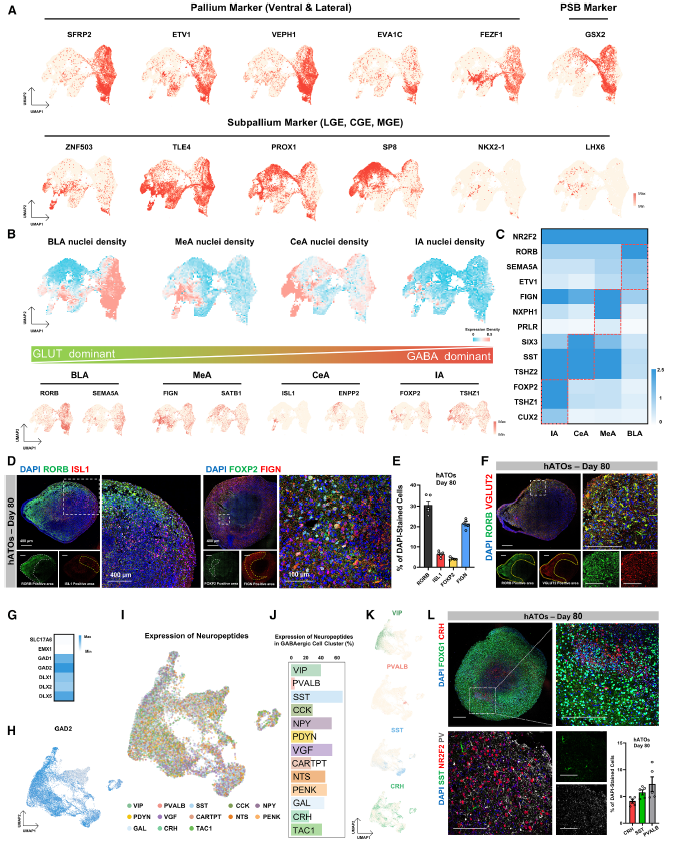
图2 hATOs重现人类发育中杏仁核的发育和分子特征
3、hATO-hypoTO组装体成功建立了功能性的杏仁核-下丘脑双向神经回路
生理状态下杏仁核是 HPA 应激轴的关键调控中枢,感知外界威胁后,杏仁核释放 CRH 激活下丘脑室旁核 PVN,启动机体皮质醇分泌,海马与前额叶皮层则发挥负反馈调节作用。GO 富集分析结果显示,hATO 的转录组显著富集恐惧反应、应激应答、学习记忆、边缘系统发育相关通路,具备杏仁核对应的功能分子基础(图3A-B)。为在体外搭建完整应激环路,研究首先对传统下丘脑类器官方案进行改造,将人胚胎干细胞消化为单细胞,依靠双 SMAD 抑制诱导神经外胚层,在第 710 天加入 BMP4 完成背侧化诱导,下调腹侧下丘脑标记,上调 PVN 关键转录因子SIM1、BRN2、ARNT2以及 CRH、VIP 等神经肽,获得带有室旁核 PVN 特征的下丘脑类器官 hypoTO。随后将 GFP 标记的 hATO 与 tdTomato 标记的 hypoTO 进行融合,构建 hATOhypoTO 组装体(图3C)。融合 55 天后,两类类器官长出双向轴突投射,突触标记 PSD95、gephyrin、synaptophysin 发生共定位,证明形成了兴奋性和抑制性突触接触;研究进一步采用光遗传钙成像开展功能验证,用光刺激 hATO 神经元,能够显著诱发 hypoTO 内部钙信号升高,证实这套组装体构建出有功能的跨脑区神经环路(图3D-3K)。
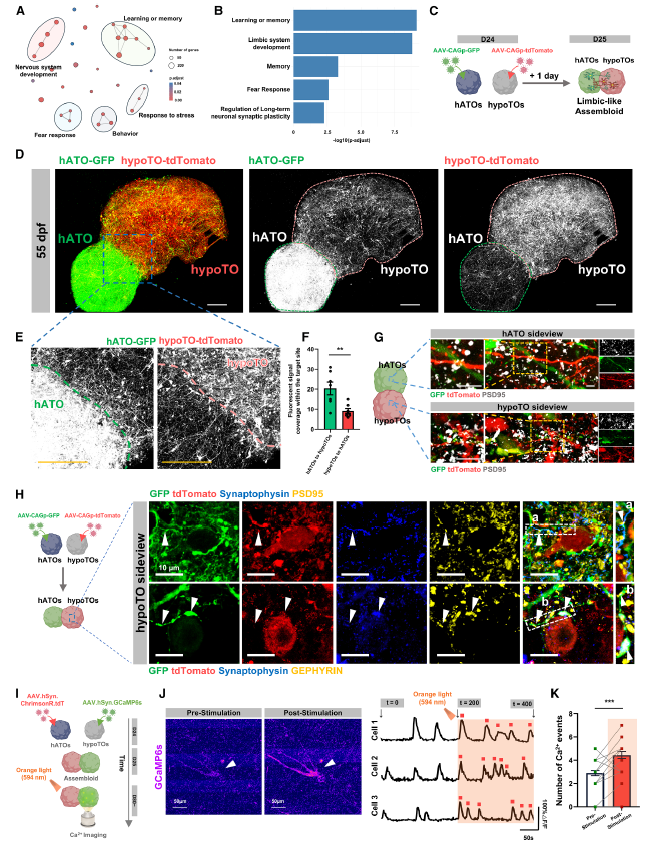
图3 hATO-hypoTO组装体成功建立了功能性的杏仁核-下丘脑双向神经回路
4、皮质醇诱导的应激相关基因程序和CRH信号激活
发育阶段的杏仁核高表达糖皮质激素受体 GR 与盐皮质激素受体 MR,对产前的糖皮质激素暴露十分敏感(图4A-D)。该研究选用 10 μM 皮质醇处理 hATO 持续 24 小时,该处理不会造成明显细胞死亡,可以模拟产前急性高皮质醇暴露的生理场景。皮质醇刺激可以促使 GR、MR 发生细胞核转位,启动下游应激转录程序,应激靶基因FKBP5、MT2A上调,细胞氧化应激水平、ROS 活性同步升高。值得关注的是,经过皮质醇处理后,只有 hATO 会特异性上调并分泌 CRH 应激激素,普通的皮层类器官并不会出现该表型(图4E-O)。
为进一步解析脑区间的信号传递过程,研究搭建微流控芯片系统,芯片拥有两个依靠微通道连通的独立腔室,允许神经突起穿过,但腔室之间液体互不流通,可实现单侧精准给药。实验发现,仅仅对 hATO 施加皮质醇,hypoTO 腔室中 CRH 的蛋白与 mRNA 水平就会显著上升;而直接单独刺激 hypoTO 则不会出现 CRH 升高,说明皮质醇首先作用于杏仁核,再通过神经环路向下游传递信号激活下丘脑,在体外复现 HPA 轴的应激级联反应(图4P-S)。
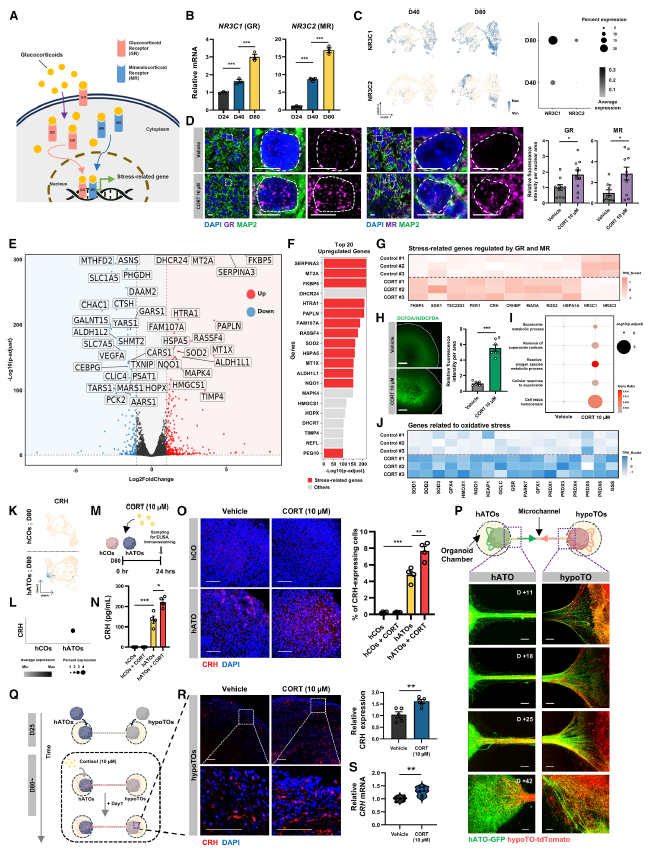
图4 皮质醇诱导的应激相关基因程序和CRH信号激活
5、皮质醇诱导灵长类特异性非编码RNABCYRN1破坏突触基因程序
人类基因组中约 40% 序列为转座元件,参与基因组调控,但产前应激是否借助转座元件干扰人脑神经发育并不清楚。研究对皮质醇处理后的 hATO 开展转座子分析,并没有观测到全基因组转座子大规模激活,而是发生少数特定元件的选择性上调,其中灵长类特有、逆转座子起源的长非编码 RNABCYRN1(BC200)上调幅度最为突出(图5A-G)。BCYRN1 主要在脑组织富集,参与突触局部蛋白翻译调控,既往仅在阿尔茨海默病样本中发现其表达升高(图5H-J)。scATACseq 染色质可及性测序结果显示,皮质醇GR 信号可以重塑染色质,打开 BCYRN1 基因位点提升转录活性,该效应主要发生于神经元,并且可以在独立 iPSC 细胞系来源的类器官上重复(图5K-M)。BCYRN1 上调之后,突触形成、轴突发育相关基因通路被显著抑制,突触后关键支架蛋白 PSD95 的 mRNA 和蛋白表达水平下降,出现突触结构损伤(图5N-R)。
研究进一步开展 shRNA 敲低回救实验,敲低 hATO 中的 BCYRN1 之后再给予皮质醇刺激,PSD95 蛋白得到部分保留,突触相关基因被抑制的现象得到缓解(图5S-T)。证实完整分子通路:皮质醇结合糖皮质激素受体 GR → BCYRN1 位点染色质开放、表达上调 → 抑制突触相关基因表达 → 突触功能破坏。由于 BCYRN1 属于灵长类特有分子,小鼠不存在同源基因,这也解释了为什么啮齿类动物模型无法完整复刻人类产前应激带来的大脑损伤。
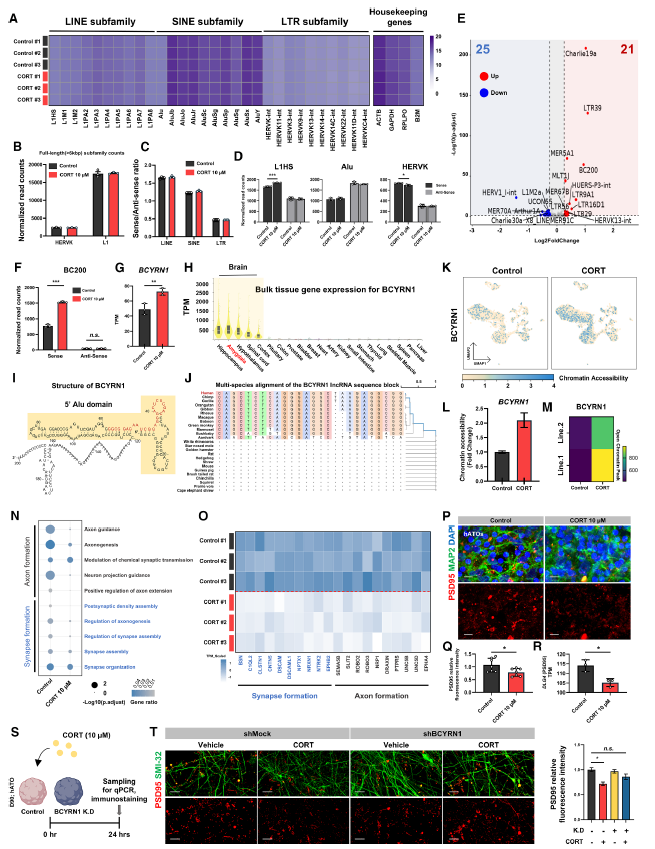
图5 皮质醇诱导灵长类特异性非编码RNABCYRN1破坏突触基因程序
·小结 ·
本研究成功建立 hATO 人类杏仁核脑类器官,并且构建 hATOhypoTO 杏仁核下丘脑组装体,体外模拟人类边缘系统应激环路。借助这套人源模型,揭示了一条灵长类独有的应激损伤通路:皮质醇通过表观激活逆转座子来源非编码 RNA BCYRN1,造成突触破坏。 该成果填补人杏仁核体外模型空白,为解析产前应激、焦虑、抑郁、PTSD 等神经精神疾病的早期发育起源,提供全新实验体系,BCYRN1 也有望成为未来疾病标志物或干预靶点。
参考文献
Yang WS, et al. Human amygdala-like telencephalic organoids model stress circuitry in assembloid systems. Cell Stem Cell. 2026 Jul 2;33(7):1144-1160.e9. doi: 10.1016/j.stem.2026.04.021. PMID: 42184826.
开学焕新季
和元生物CRO多组学服务
和元生物提供多组学服务(如转录组、蛋白组、代谢组、微生物组等)和单细胞及空间转录组服务(如10x Genomics GEM-X单细胞转录组(V4.0)、10x Genomics单细胞转录组(V3.1)、10x单细胞转录组及TCR/BCR、墨卓单细胞转录组、DNBelab C-TaiM4单细胞转录组、10x HD空间转录组等),致力于为广大生命科学家、医学工作者提供基于多组学的科研及临床应用解决方案。累计协助客户在Advanced Functional Materials、ACS Nano、Nature Aging、Cancer Research、Neuron、Advanced Science、Experimental & Molecular Medicine、Journal of Nanobiotechnology、Cell Death and Disease等期刊发表SCI论文,并推出了广受好评的生信分析云平台【 https://analysis.obiosh.com/ 】 ,助您高效实现个性化数据挖掘!
